
1. Epigenetica: come si regola l’espressione dei geni
Dal DNA al fenotipo: quattro concetti da separare
Il DNA è la molecola che contiene una sequenza di nucleotidi, organizzata in regioni con funzioni diverse. Un gene è una regione di DNA la cui informazione contribuisce alla produzione di una molecola funzionale, come un RNA o una proteina. L’espressione genica è l’insieme dei processi attraverso i quali quell’informazione viene utilizzata; il fenotipo è l’insieme delle caratteristiche osservabili di un organismo, derivate dall’interazione di patrimonio genetico, sviluppo, ambiente e componenti casuali.
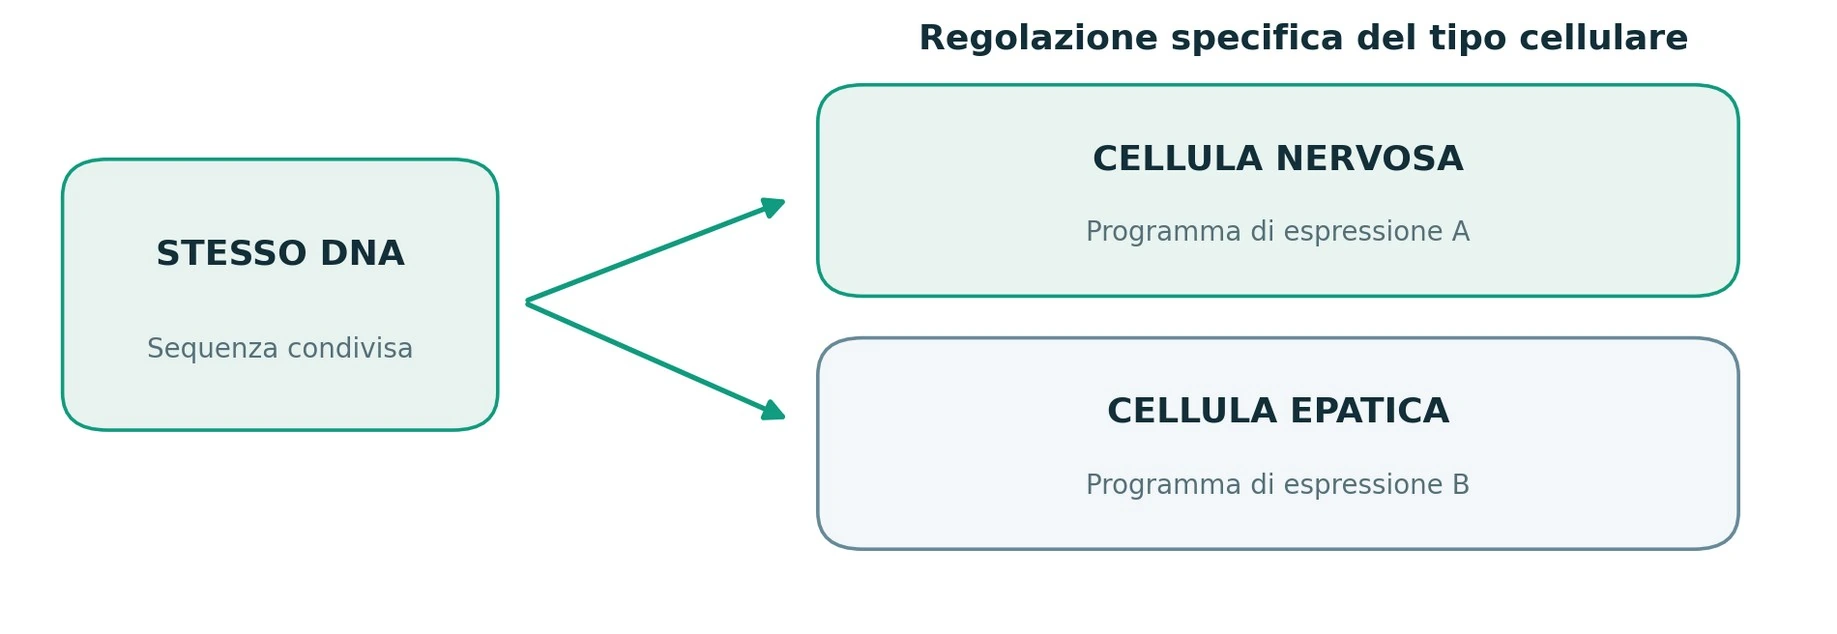
Non tutti i geni sono espressi nello stesso momento o nello stesso tessuto. Una cellula del fegato e una cellula nervosa possiedono, salvo eccezioni, sostanzialmente la stessa sequenza di DNA, ma svolgono funzioni differenti. Per riuscirci regolano l’accessibilità del materiale genetico e l’attività delle reti di geni. Dire che un gene è «acceso» o «spento» può essere una metafora didattica, ma in realtà l’espressione è spesso quantitativa, dipende dal tipo cellulare e varia nel tempo.
L’epigenetica studia meccanismi che contribuiscono a regolare l’attività genica senza alterare la sequenza delle basi del DNA. Il termine non equivale a «qualsiasi effetto dell’ambiente»: una variazione di comportamento o di livello ormonale non è, da sola, la prova di un cambiamento epigenetico. In letteratura esistono anche differenze nella definizione rigorosa di epigenetica, specialmente rispetto alla stabilità e all’ereditarietà degli stati cellulari.
Metilazione del DNA, istoni e cromatina
La metilazione del DNA consiste nell’aggiunta di gruppi metile a specifiche basi, spesso a citosine in siti CpG nei vertebrati. In molte regioni regolatorie un’elevata metilazione si associa a una minore attività trascrizionale, ma la relazione non è universale: posizione, contesto molecolare e tipo cellulare contano. Non è corretto affermare che la metilazione «spegne sempre» un gene.
Il DNA è avvolto intorno a proteine chiamate istoni, formando strutture dette nucleosomi. Le modificazioni chimiche degli istoni, insieme ai complessi che rimodellano la cromatina, possono facilitare o limitare l’accesso dei macchinari di trascrizione. Il risultato non dipende da un unico interruttore, ma da una rete di segnali, proteine regolatrici, condizioni cellulari e retroazioni.
Un terzo gruppo di elementi è rappresentato dagli RNA non codificanti, alcuni dei quali partecipano alla regolazione genica. Non tutti i meccanismi regolatori sono automaticamente epigenetici. È importante distinguere la regolazione immediata dell’espressione dalla formazione di stati cellulari relativamente persistenti.
Ambiente e stile di vita: che cosa dimostrano gli studi
Esposizioni come fumo, inquinanti, alimentazione, infezioni e condizioni di sviluppo possono associarsi ad alterazioni dei profili epigenetici. Il punto metodologico cruciale è identificare la catena causale. Una differenza di metilazione osservata in due gruppi può essere una causa, una conseguenza, un indicatore di differente composizione cellulare o il risultato di un fattore non misurato. Gli studi osservazionali, per definizione, non risolvono automaticamente queste alternative.
La ricerca sull’ambiente prenatale è particolarmente importante perché lo sviluppo embrionale comporta intensi processi di regolazione e differenziazione. Tuttavia, il fatto che un ambiente possa contribuire a una vulnerabilità non implica che il destino di una persona sia predeterminato. Allo stesso modo, non autorizza l’affermazione opposta secondo cui bastino buone abitudini per neutralizzare qualsiasi predisposizione genetica.
Esempio ragionato. Supponiamo di confrontare persone esposte e non esposte al fumo. Se rileviamo una differenza media in alcuni marcatori epigenetici, abbiamo una correlazione da approfondire. Per stimare un effetto causale servono disegni adeguati, misure dell’esposizione, controlli per età e composizione dei tessuti, replicazioni e possibilmente evidenze meccanicistiche. Non possiamo dedurre dal semplice confronto che quei marcatori siano la causa di una specifica malattia.
Ereditarietà epigenetica: la distinzione che spesso manca
Quando una cellula si divide, alcuni stati epigenetici possono essere mantenuti nelle cellule figlie: ciò è fondamentale per l’identità dei tessuti. L’ereditarietà intergenerazionale riguarda effetti osservati tra genitori e figli; l’ereditarietà transgenerazionale, in senso più restrittivo, richiede che un effetto persista in generazioni non direttamente esposte. Negli esseri umani dimostrare quest’ultima è difficile, perché intervengono trasmissione genetica, condizioni uterine, abitudini familiari, cultura e ambiente condiviso.
Gran parte dei segni epigenetici viene riprogrammata durante lo sviluppo delle cellule germinali e dell’embrione. Esistono eccezioni biologicamente rilevanti, tra cui fenomeni di imprinting genomico, ma non vi sono basi per sostenere in generale che esperienze o traumi personali vengano trasmessi ai nipoti come un archivio epigenetico dettagliato. Il grado di evidenza varia molto da organismo a organismo.
Salute, malattie e applicazioni
Le alterazioni epigenetiche sono oggetto di studio in oncologia, biologia dello sviluppo e altre aree della medicina. In alcuni tumori possono contribuire alla perdita di controllo della proliferazione cellulare; in specifici contesti clinici vengono utilizzate informazioni molecolari per orientare classificazione e trattamento. Non significa che ogni malattia abbia una «causa epigenetica» identificabile o che esistano test commerciali universalmente validi per misurare la propria «età epigenetica» e trasformarla in una diagnosi.
In termini pratici, il messaggio solido non è «controlla l’accensione dei tuoi geni», ma «l’ambiente biologico e comportamentale interagisce con la regolazione cellulare». Sonno, alimentazione adeguata, movimento e riduzione di esposizioni nocive possono essere rilevanti per la salute per numerose vie fisiologiche; attribuire tutti questi benefici all’epigenetica sarebbe un errore di riduzione.
Valutare una promessa biologica: un caso ragionato
Una pubblicità sostiene che un integratore «attiva i geni della longevità». La frase, da sola, non dimostra né efficacia né sicurezza: non identifica quali geni sarebbero coinvolti, in quali cellule e con quali misurazioni. Un effetto in una coltura cellulare non equivale a un beneficio clinico negli esseri umani. Anche un cambiamento di biomarcatore, se documentato, rimane distinto dalla prova di una maggiore durata della vita. Per sostenere la promessa servirebbero gruppi di controllo, esiti clinicamente rilevanti e una valutazione della sicurezza; il passaggio da un marcatore modificato alla longevità non è quindi giustificato dalle sole parole dell’annuncio.
Genotipo, regolazione dell’espressione e ambiente sono piani connessi ma distinti. L’epigenetica spiega parte della plasticità dei programmi cellulari; non offre una teoria secondo la quale la volontà individuale possa riscrivere liberamente il proprio destino biologico.
Interpretare le prove molecolari
Una misura epigenetica acquista significato quando vengono precisati tessuto, tipo cellulare, tecnica, durata, variabilità tra campioni e controlli. Il fenomeno osservato, il meccanismo proposto e l’esito funzionale sono livelli collegati, ma distinti. Una prova utile produce previsioni diverse per le spiegazioni concorrenti: il cambiamento molecolare potrebbe essere causa, conseguenza o effetto di un fattore comune. L’assenza di una misura intermedia non rende necessariamente assurda un’ipotesi, ma limita quanto può essere considerata dimostrata.
L’analisi richiede definizioni operative e un confronto tra casi: una spiegazione semplificata resta valida solo entro le condizioni che la sostengono. Un esempio costruito serve a comprendere il ragionamento, non costituisce un dato empirico sulla popolazione. Anche il trasferimento di un principio a un’altra disciplina richiede di conservare ciò che è pertinente e di verificare le assunzioni specifiche. I casi che seguono sono illustrativi e vengono discussi insieme alla loro interpretazione, senza trasformare una possibilità biologica in una promessa clinica.
Sequenza genetica, varianti e regolazione
Il genoma contiene istruzioni e regioni regolatrici; la sequenza non coincide con il livello di attività di ogni gene. Anche le varianti ereditate possono modificare la risposta di un elemento regolatorio. Confrontare due persone significa distinguere varianti di DNA, composizione dei tessuti e esposizioni. Se un marcatore cambia, non possiamo attribuirlo alla sola epigenetica senza aver escluso alternative.
Due cellule con la stessa variante genetica producono quantità diverse di una proteina in risposta a segnali extracellulari differenti. La differenza non dimostra una mutazione: può derivare dall’attivazione di circuiti regolatori, senza che si sia formato uno stato stabile. Anche una misurazione ripetuta dell’espressione descriverebbe anzitutto quanto prodotto è presente; per spiegare il processo servono misure delle condizioni cellulari e della loro evoluzione nel tempo.
Una differenza di espressione può essere transitoria: per definirla uno stato epigenetico stabile occorrono prove ulteriori sulla persistenza e sul meccanismo. Sequenza, quantità di RNA e quantità di proteina sono misure complementari, non sostituti equivalenti.
Una verifica coerente confronta cellule dello stesso tipo, misura la sequenza e l’espressione prima e dopo il segnale e controlla ciò che accade quando il segnale viene meno. In questo modo separa l’identità del DNA dalla risposta regolatoria, senza attribuire automaticamente al cambiamento un effetto clinico.
Promotori, enhancer e fattori di trascrizione
Il promotore è una regione collegata all’avvio della trascrizione; gli enhancer possono regolare l’attività di geni anche a distanza sul DNA lineare. I fattori di trascrizione riconoscono sequenze e cooperano con complessi che modificano l’accessibilità della cromatina; contano struttura tridimensionale e stato della cellula.
Un enhancer presente sia in una cellula del fegato sia in un neurone può essere attivo soltanto nella prima. Il contesto comprende i fattori di trascrizione disponibili, i complessi associati alla cromatina e i contatti tridimensionali tra regioni. Il fatto che un enhancer si trovi vicino a un gene nello spazio è compatibile con una regolazione, ma non prova che quel contatto sia necessario o sufficiente per modificarne l’espressione.
Un’associazione spaziale è un indizio da integrare con una prova funzionale. Perturbare l’enhancer e osservare il gene candidato permette di verificare una previsione causale, purché si controllino effetti indiretti e si operi nel tessuto pertinente.
Se l’intervento modifica l’espressione rispetto a un controllo adeguato, il risultato sostiene un ruolo regolatorio in quelle condizioni. La replicazione serve a distinguere un effetto riproducibile da un episodio tecnico; il trasferimento a un altro tipo cellulare richiede una verifica separata.
Metilazione nei diversi contesti
La metilazione del DNA è una modificazione chimica misurabile, non una misura diretta del benessere individuale. In alcuni promotori può accompagnare la repressione trascrizionale; in altre regioni il rapporto con l’espressione è differente. Metilazione globale e metilazione locale non sono intercambiabili.
Nel caso descritto, aumento della metilazione e riduzione dell’espressione compaiono insieme. Questo permette di formulare un’ipotesi regolatoria, ma non stabilisce quale cambiamento sia avvenuto per primo né esclude una causa comune. Inoltre una percentuale aggregata può riflettere proporzioni diverse di tipi cellulari, anziché un cambiamento uniforme in ogni cellula. Il significato del dato dipende quindi dal locus e dal campione effettivamente misurati.
Meno metilazione non significa automaticamente più salute. Una modificazione locale e una misura globale riassumono fenomeni differenti; per collegarle a un esito funzionale servono dati sull’espressione e sul contesto biologico.
Un confronto utile mantiene comparabili tessuto e composizione cellulare e documenta metodo, età, esposizioni e incertezza. Misure longitudinali chiariscono la sequenza temporale, mentre interventi mirati possono verificare se modificare quel sito cambi davvero l’espressione del gene.
Istoni e rimodellamento della cromatina
Il DNA avvolto negli istoni crea nucleosomi; la cromatina può diventare più o meno accessibile in modo dinamico. Acetilazioni e altre modificazioni degli istoni possono associarsi a stati funzionali specifici, ma nessun singolo marchio vale come un codice automatico universale.
Una cellula riceve un segnale, modifica proteine regolatrici e accessibilità della cromatina e successivamente aumenta un trascritto. Questa sequenza temporale è coerente con una regolazione della trascrizione, ma rimane da distinguere il ruolo dei singoli passaggi. Il segnale potrebbe agire contemporaneamente su più processi; osservare una modifica istonica prima dell’aumento di RNA non dimostra che essa spieghi da sola l’intero risultato.
Una firma della cromatina non costituisce un codice universale che determina senza eccezioni l’attività di tutti i geni vicini. Il significato dipende dalle proteine coinvolte, dal sito, dagli altri segnali e dallo stato della cellula.
La catena va seguita fino all’esito pertinente: accessibilità, RNA, proteina e funzione non sono lo stesso livello di misura. Una perturbazione controllata del passaggio candidato permette di verificare se la previsione regga, mentre un cambiamento del solo marcatore non autorizza conclusioni fisiologiche o cliniche automatiche.
RNA non codificanti e reti
Non tutto l’RNA codifica proteine; molte specie di RNA partecipano a regolazione, maturazione e stabilità dei trascritti. MicroRNA e alcuni RNA lunghi possono influenzare l’espressione, ma il loro ruolo cambia con ambiente e tipo cellulare. La regolazione non si riduce a un’unica molecola.
Nella coltura illustrata, il microRNA varia mentre una proteina diminuisce. È possibile un’interazione regolatoria diretta, ma anche un effetto indiretto o una risposta comune a un altro segnale. Il caso non consente perciò di identificare il bersaglio esclusivamente dalla direzione opposta dei due cambiamenti. L’ambiente della coltura e il tipo di cellule delimitano inoltre ciò che il risultato può spiegare.
Un RNA regolatorio non è automaticamente un meccanismo epigenetico ereditabile. La partecipazione alla regolazione dell’espressione è una proprietà diversa dalla capacità di mantenere e trasmettere uno stato nel tempo.
La prova funzionale richiede di perturbare il candidato, misurare i bersagli previsti e confrontare controlli che permettano di riconoscere effetti fuori bersaglio. La concordanza delle misure sostiene l’ipotesi solo entro il disegno sperimentale considerato: non trasforma una singola molecola nella spiegazione completa della rete.
Differenziamento, cellule staminali e sviluppo
Le cellule specializzate conservano programmi di espressione diversi nel tempo, pur condividendo gran parte del patrimonio genetico. Durante lo sviluppo i segnali regolano reti geniche con retroazioni; la stabilità di un’identità cellulare non richiede inattività dell’intero genoma.
Le cellule progenitrici dell’esempio ricevono segnali differenti e sviluppano funzioni distinte. Questo illustra come un patrimonio genetico largamente condiviso possa sostenere traiettorie diverse. Le retroazioni contribuiscono a stabilizzare i programmi di espressione, senza richiedere che il resto del genoma sia completamente inattivo. La specializzazione emerge dall’organizzazione delle reti e dal contesto dello sviluppo.
Lo stato cellulare descrive la condizione osservata in un momento; il destino cellulare riguarda una traiettoria possibile. Confonderli porta a trattare come inevitabile un esito che dipende anche dai segnali e dalle condizioni successive.
Per verificare l’effetto dei segnali si possono confrontare progenitori comparabili esposti a condizioni diverse, seguendo nel tempo espressione e funzioni. Un singolo gene può avere un ruolo rilevante, ma non per questo esaurisce la spiegazione di un tessuto: vanno considerate interazioni e risposte della rete.
Imprinting genomico
In alcuni geni l’espressione dipende dalla provenienza materna o paterna della copia, attraverso meccanismi regolatori specifici. Durante la formazione dei gameti e lo sviluppo avvengono riprogrammazioni, ma alcuni segnali parentali sono mantenuti secondo regole biologiche precise.
Quando le due copie di un gene non vengono utilizzate simmetricamente, l’informazione sulla sequenza deve essere integrata con l’origine parentale e con i meccanismi regolatori della regione. L’asimmetria non significa che una copia sia universalmente migliore dell’altra: descrive una modalità specifica di espressione che deve essere identificata nel suo contesto biologico.
L’imprinting genomico riguarda regioni e schemi regolatori documentabili. Non dimostra che qualsiasi esperienza dei genitori venga registrata nei gameti come una memoria dettagliata e trasmessa ai figli o ai nipoti.
Una verifica pertinente distingue le copie parentali e ne misura l’espressione, collegandola ai segnali molecolari noti nella regione. Una pretesa trasmissione di traumi richiederebbe invece prove aggiuntive, capaci di separare esposizione diretta, genetica, ambiente familiare e persistenza in generazioni non esposte.
Esposizioni prenatali e causalità
Le esposizioni in sviluppo possono avere effetti di lungo periodo, ma le persone esposte differiscono spesso anche per molte altre caratteristiche. Fattori nutrizionali, sociali e ambientali sono correlati; un risultato osservativo richiede una valutazione attenta di confondimento, selezione e composizione dei campioni.
Una differenza media in un biomarcatore tra gruppi di nascita descrive anzitutto una distribuzione di misure. I gruppi possono differire per nutrizione, condizioni sociali, ambiente e selezione delle persone osservate. Il biomarcatore potrebbe essere parte di un processo causale, una conseguenza o un indicatore di altre condizioni; la sua presenza non permette di prevedere con certezza il futuro di ogni neonato.
Un’associazione di gruppo non è una diagnosi individuale né un destino biologico. L’identificazione causale richiede di ricostruire tempi e alternative, invece di attribuire tutte le differenze all’esposizione scelta come spiegazione.
Dati longitudinali e confronti appropriati consentono di seguire l’esposizione e gli esiti; analisi di sensibilità verificano quanto le conclusioni dipendano dai confondenti. La coerenza con un meccanismo misurato rafforza l’interpretazione, ma i limiti di selezione e misurazione restano parte del risultato.
Ambiente, lavoro e inquinanti
Alcune sostanze ambientali si associano a differenze epigenomiche; questo non significa che ogni esposizione abbia una firma unica e permanente. La dose, la durata, la finestra di esposizione e il tessuto misurato condizionano l’interpretazione biologica.
Due lavoratori con esposizioni professionali diverse mostrano biomarcatori differenti: nel confronto possono però intervenire anche età, fumo e altre condizioni individuali. La misura va interpretata insieme a dose, durata e finestra di esposizione. Una differenza nel sangue descrive quello specifico campione e non equivale automaticamente a una differenza dello stesso significato nel cervello.
Un test epigenetico non quantifica con certezza universale il danno individuale. Una firma può essere utile in determinati contesti, ma la trasferibilità tra tessuti e la persistenza nel tempo devono essere dimostrate.
Un confronto più informativo misura l’esposizione, considera i principali confondenti e documenta composizione cellulare, tecnica e variabilità. Se l’obiettivo riguarda un esito in un altro organo, serve inoltre una validazione del legame con quell’esito: il nome comune di un marcatore non elimina le differenze biologiche tra tessuti.
Epigenetica del cancro
Alterazioni della regolazione genica possono partecipare alla trasformazione tumorale insieme a mutazioni, selezione cellulare e segnali del microambiente. Alcuni tumori presentano profili molecolari caratteristici utilizzabili in ricerca e in applicazioni cliniche specifiche, senza esaurire la complessità della malattia.
Il silenziamento di una regione regolatoria in cellule tumorali può contribuire alla crescita, ma può anche essere una conseguenza della trasformazione o di altre condizioni. La presenza del segnale non decide tra queste alternative. Per chiarirne il ruolo occorre collocarlo nella storia del tumore e nelle interazioni tra mutazioni, selezione cellulare e microambiente.
Un marcatore predittivo può aiutare a classificare o anticipare un esito senza essere la causa modificabile di quell’esito. La capacità di previsione non coincide dunque con l’efficacia di un bersaglio terapeutico.
Una verifica funzionale valuta se intervenire sul meccanismo candidato cambi la crescita o un altro esito pertinente rispetto a controlli adeguati. Le applicazioni cliniche restano specifiche: descrivere ogni tumore come un problema puramente epigenetico, risolvibile con abitudini personali, cancella componenti essenziali della malattia.
Orologi epigenetici
Alcuni modelli statistici combinano pattern di metilazione per stimare misure correlate all’età e ad altri esiti. Un’età stimata è una previsione costruita con una popolazione e un metodo: non equivale a certificare anni di vita residui per un singolo individuo.
Se un servizio stima un’età biologica di cinque anni superiore a quella anagrafica, il numero è l’uscita di un modello. Per interpretarlo contano la popolazione su cui il modello è stato costruito, il metodo di misura e il suo errore. Non significa che la persona abbia perso esattamente cinque anni di vita, né identifica da solo un trattamento capace di recuperarli.
Un indice statistico correlato all’età non è automaticamente un meccanismo causalmente controllabile. Anche una variazione favorevole dell’indice dopo un intervento non prova, da sola, un miglioramento degli esiti clinici.
Validazione esterna, ripetibilità e rilevanza clinica delimitano l’utilità del test. Un risultato robusto dovrebbe mantenere prestazioni adeguate in campioni pertinenti e rendere esplicita l’incertezza; la prognosi individuale richiede informazioni ulteriori rispetto a una singola età stimata.
Interventi sullo stile di vita
Sonno, attività fisica e alimentazione sono importanti per numerosi sistemi fisiologici, non soltanto per i marcatori epigenetici. Un cambiamento osservato dopo un intervento può dipendere da molte vie biologiche; isolare il ruolo specifico dei meccanismi epigenetici richiede esperimenti adeguati.
Il caso considera un gruppo che pratica esercizio per dodici settimane e mostra marcatori differenti alla fine. Un confronto prima-dopo non esclude altri cambiamenti contemporanei, differenze iniziali o selezione dei partecipanti. La randomizzazione e un gruppo di controllo appropriato migliorano l’interpretazione dell’intervento, ma non dimostrano automaticamente quale via biologica abbia prodotto ogni beneficio.
L’effetto su un biomarcatore e l’effetto sulla salute sono esiti diversi. Per attribuire un beneficio a una mediazione epigenetica occorre verificare i passaggi che collegano intervento, cambiamento molecolare ed esito, senza sostituire questi dati con una promessa nutrizionale.
La valutazione combina quindi misure molecolari e cliniche, controlli e tempi coerenti. Sonno, movimento e alimentazione agiscono attraverso numerosi sistemi fisiologici; un particolare alimento non può essere presentato come interruttore di geni favorevoli in assenza delle prove pertinenti.
Ereditarietà tra generazioni
La trasmissione di effetti può avvenire per DNA, ambiente uterino, cultura, condizioni economiche e comportamenti di cura. Per stabilire un meccanismo epigenetico transgenerazionale bisogna separare esposizione diretta, eredità genetica e ambiente condiviso.
La dieta dei nonni può essere associata a un esito nei nipoti senza che la via sia una trasmissione epigenetica. Le famiglie condividono geni, risorse economiche, pratiche alimentari, ambiente e forme di cura. Questi canali possono persistere per generazioni e produrre somiglianze che un semplice confronto statistico non riesce a separare.
La persistenza di un’associazione familiare non dimostra che un trauma sia stato copiato integralmente nei gameti. Per parlare di trasmissione epigenetica transgenerazionale occorre identificare il meccanismo e distinguere generazioni direttamente esposte da generazioni non esposte.
Negli esseri umani la durata delle generazioni, il cumularsi dei confondenti, la riprogrammazione epigenetica e i limiti degli interventi sperimentali rendono la prova particolarmente difficile. Una spiegazione credibile confronta i canali concorrenti e conserva tale incertezza, anche quando l’associazione osservata è interessante.
Disegnare uno studio epigenetico
Una buona ricerca parte da ipotesi falsificabili, campioni giustificati e definizioni operative delle misure. Occorre pianificare controlli di qualità, multiple testing, composizione cellulare e replicazione indipendente; migliaia di siti analizzati creano il rischio di falsi segnali.
Nel caso sono analizzate centomila regioni senza adeguare la procedura ai confronti multipli. Alcune associazioni possono emergere per caso anche quando non esiste l’effetto cercato. Se poi vengono presentati soltanto i marcatori più spettacolari, il lettore non vede l’insieme dei tentativi che ha prodotto quei risultati e può sopravvalutarne la solidità.
La selezione a posteriori non trasforma un segnale esplorativo in prova definitiva. Controlli di qualità, composizione cellulare, correzioni statistiche e distinzione tra esplorazione e conferma fanno parte del disegno, non sono dettagli da aggiungere solo dopo un risultato favorevole.
Una conclusione più credibile nasce da ipotesi e analisi definite con trasparenza, preregistrazione quando appropriata e conferme in campioni indipendenti. La replicazione deve riguardare misure e condizioni pertinenti; il collegamento con una funzione biologica richiede a sua volta una verifica distinta dalla significatività statistica.